


業界ニュース
飢餓時にアミノ酸代謝を支える新規ホルモン様ペプチドを発見
2026.09.28
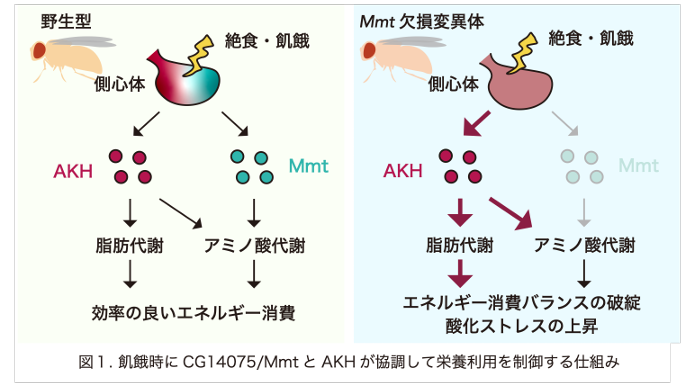
群馬大学生体調節研究所の吉成祐人助教、西村隆史教授、筑波大学生存ダイナミクス研究センターの丹羽隆介教授、熊本大学らの研究グループは18日、モデル生物であるキイロショウジョウバエを用い、飢餓時に働く新たなホルモン様ペプチドCG14075/Marmite(Mmt)が、アミノ酸代謝を促進し、栄養不足への適応を支えていることを突き止め、発表した。
 栄養不足への適応を制御する仕組みの一端が明らかに
群馬大学生体調節研究所の吉成祐人助教、西村隆史教授、筑波大学生存ダイナミクス研究センターの丹羽隆介教授、熊本大学らの研究グループは18日、モデル生物であるキイロショウジョウバエを用い、飢餓時に働く新たなホルモン様ペプチドCG14075/Marmite(Mmt)が、アミノ酸代謝を促進し、栄養不足への適応を支えていることを突き止め、発表した。
この研究成果は9月12日付で、英国科学誌「Nature Communications」オンライン版に掲載されている。
動物は食物から得た栄養素を体内に蓄え、必要に応じて分解・利用することで生存を保っている。栄養が十分にある状態では、糖や脂質などの栄養素は体内に蓄えられていく。一方、飢餓のように食物を摂取できなくなると、体内に蓄えられた栄養素を段階的に利用し、生命活動に必要なエネルギーを作り出す。
飢餓の初期には、グリコーゲン等の糖質が分解され、血糖やエネルギー産生に用いられる。さらに飢餓が続くと、脂質の分解が進み、脂肪酸が主要エネルギー源として使われるようになる。さらに長時間の飢餓では、アミノ酸も重要なエネルギー源となるほか、代謝中間体の供給源となることが知られている。
このように生体は飢餓の進行に応じ、糖、脂質、アミノ酸という複数の栄養源を切り替えながら利用しているが、この切替には内分泌ホルモンが重要な役割を果たす。
しかし、飢餓が長引いたとき、アミノ酸代謝がどのように制御されるのか、また糖・脂質・アミノ酸という複数栄養源をどういったホルモンが協調して調節しているのかといった詳細についてはほとんど分かっていない。
そこで研究グループでは、キイロショウジョウバエを用いて飢餓時に分泌される新たなホルモン様因子を探索、その中で、とくに高い遺伝子発現を示したMmtに着目し、この機能未知の分泌性因子が飢餓時の代謝適応に関わる可能性を検証したという。
複雑な役割分担で進む代謝適応
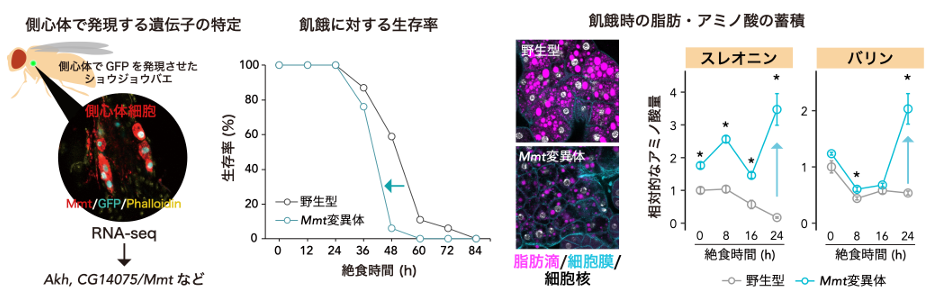
まずMmtがどの組織で発現しているのかを調べたところ、脂質動員ホルモンAKHを産生する神経内分泌器官である側心体細胞に特異的に発現していることが分かった。
さらにMmtたんぱく質を検出する抗体を作製し、飢餓時に体液中へ分泌されるかどうかを見たところ、通常の摂食状態では体液中に少量しか検出されなかったが、飢餓が進むにつれ、体液中の量が増加していた。この増加は、体内のグリコーゲンや脂質の貯蔵が低下していく時期とちょうど重なっていたという。
ここからMmtが、飢餓が進み体内エネルギー貯蔵が減少する時期に分泌されるホルモン様ペプチドであると確認された。
次に、Mmtの働きが失われた個体を用い、飢餓時の生存能力をチェックした。するとMmt欠損のショウジョウバエは、通常個体に比べ飢餓に弱くなっていた。さらに代謝物を測定すると、Mmt欠損個体では、飢餓時にグリコーゲン、トレハロースなどの糖質がより早く低下、貯蔵脂質の消費も進みやすく、体内エネルギー貯蔵を適切に維持できていないことが分かった。
とくにスレオニンや分岐鎖アミノ酸(BCAA)であるバリン、ロイシン、イソロイシンの蓄積が顕著だった。これらのアミノ酸は通常、飢餓時に分解され、エネルギー産生や代謝中間体の供給に利用されると考えられる。よってMmtは飢餓時にアミノ酸を適切に分解・利用するために必要なものであると確認された。
続いて、Mmtによって制御されるアミノ酸代謝の役割を調べた。スレオニン代謝に関わる酵素の働きを低下させると、Mmt欠損個体同様、飢餓に弱くなり、脂質の消費が進みやすくなっていた。ここから飢餓時にスレオニンなどのアミノ酸代謝を行うことは、ただアミノ酸処理を進めるだけでなく、脂質代謝や生存にも関わる重要な仕組みであることが示唆された。
加えて、Mmt欠損個体では、脂肪体で酸化ストレスが高まっていることも判明した。飢餓時には脂質やアミノ酸の分解が進むことで、細胞内ミトコンドリアに負荷がかかり、活性酸素が増えやすくなる。
研究グループは、ミトコンドリアの酸化ストレスを抑制する因子を脂肪体で増やすと、Mmt欠損個体の飢餓に対する弱さや脂質の過剰消費が一部改善されることを見出した。ここからMmtは飢餓時のアミノ酸代謝を支えることで、ミトコンドリアの酸化ストレスを抑え、生体の代謝バランスを維持していると考えられた。
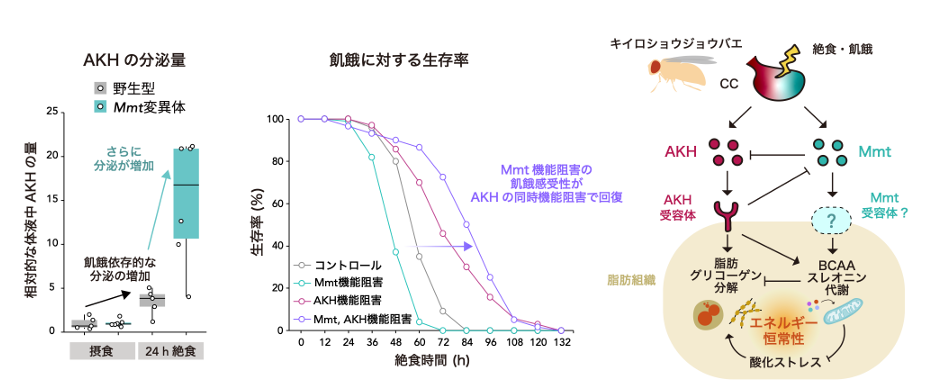
最後に、研究グループはMmtとAKHの関係を探索した。するとMmtが働かない個体では飢餓時にAKHの分泌が過剰に高まっていた。このAKHの過剰な働きは、Mmt欠損個体で糖や脂質の貯蔵が早く失われる原因の一部であるとみられている。
実際にMmtとAKHの両方の働きを同時に低下させると、Mmtを単独で低下させた場合に生じる飢餓感受性や脂質・糖の過剰な消費が一部抑えられた。Mmtの機能低下によって発生する飢餓時の活動性上昇もAKHの働き抑制により、改善されたという。ここから、Mmtが働かない場合にAKHの分泌や作用が過剰になり、糖や脂質の過剰消費につながっていると考えられた。
一方で、Mmt欠損個体で見られるスレオニンやBCAAの蓄積は、AKHの働きを抑制しても改善されなかった。アミノ酸代謝については、AKHとは一部独立した役割を持つことが分かる。
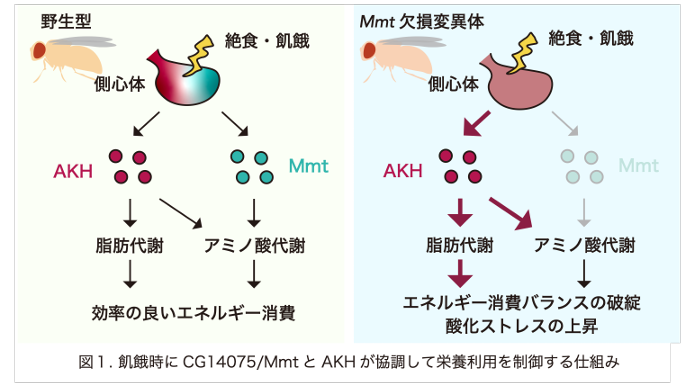
これらの結果から、Mmtは飢餓時に側心体から分泌されるホルモン様ペプチドとして、アミノ酸代謝、酸化ストレス防御、糖・脂質の利用バランス制御を行うことが明らかになった。さらにMmtとAKHは、同じ側心体細胞から分泌されるものの、異なる役割を担い、飢餓の進行に応じた代謝適応を協調的に支えているものと考えられた。
飢餓や栄養不足に対し、体がどの栄養素をいつ、どの程度利用するかを適切に調節することは、生存にきわめて重要な意義をもつものとなる。今回の研究は、そこに新たな知見を与えたものとして注目される。
飢餓時の代謝適応が、単一ホルモンによる単純な制御ではなく、複数のホルモンが時間的・機能的に役割分担することで成り立っていることを見出した点でも重要な発見だ。
研究グループでは今後、Mmtがどの受容体を介して脂肪体や他の組織に作用するのか、またMmtの分泌を促す上流シグナルが何であるのかを明らかにすることにより、栄養状態に応じた内分泌制御の理解がさらに進むものと期待しているとした。
また、昆虫で得られた知見を手がかりに、哺乳類・ヒトにおけるグルカゴンやその他ホルモンによるアミノ酸代謝制御、栄養不足時の酸化ストレス制御、代謝疾患におけるホルモン異常の理解にもつながる可能性があるとしている。
(画像はプレスリリースより)
参考文献・サイト

この記事をシェアする


